|
【Inscopix应用】Nature Neuroscience:科学家揭示进食神经环路机制2017年8月21日,Nature Neuroscience杂志发表了来自马克斯-普朗克研究机构(Max Planck Institute)Rüdiger Klein实验室的研究论文《Central amygdala circuits modulate food consumption through a positive-valence mechanism》,通过使用Inscopix nVista自由活动钙成像和在体操控脑区与环路的方法,揭示了中央杏仁核(central nucleus of the amygdala, CeA)中表达5-羟色胺2a受体的抑制神经元在调节食物消耗量中的作用。 吃,是个体生存的必要条件。 现在对于调节“吃”这一生理过程的研究,可以大致分为两类,一类集中在能量代谢稳态(energy homeostasis)的神经环路,研究饥饿与饱食信号是如何传递处理,从肠胃到脊髓,脑干,再到大脑更高级中枢的过程。这些研究有许多重要发现,比如饥饿过程中,下丘脑弓状核ARC中的AGRP阳性神经元被兴奋,同时抑制POMC阳性神经元,促进进食[1]。还有下丘脑室旁核PVN,脑干臂旁核PBN,延髓孤束核NTS等脑区,均认为参与控制(regulate)进食的神经环路[2]。
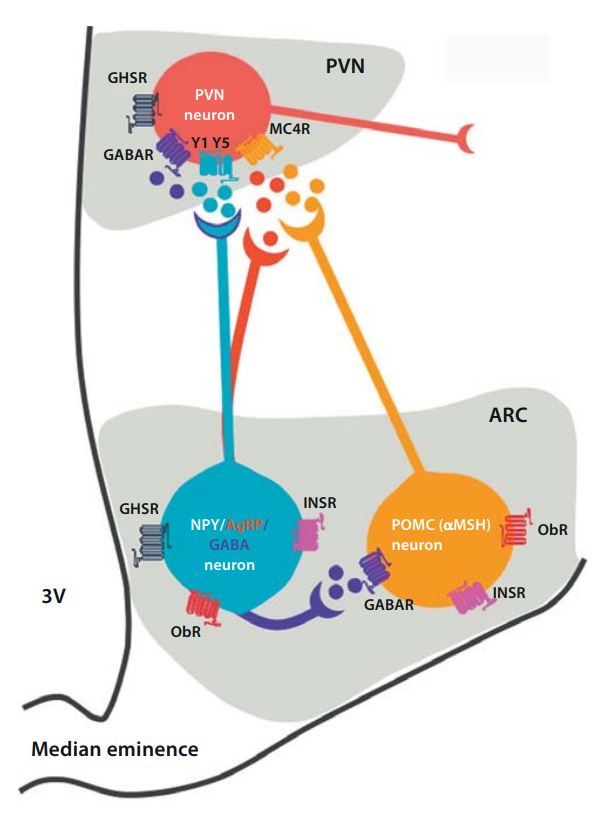
图1 饥饿过程中弓状核与下丘脑室旁核调节进食的神经环路。引自[2]。 另外一类研究关注的是在这个过程中认知与奖赏系统稳态的作用。其中研究比较多的是腹侧被盖区VTA作为大脑中多巴胺系统的中心,还有负责自上而下调控的前额叶皮层PFC,负责学习与记忆的海马,都可以参与调节(modulate)进食过程[3]。本篇文章关注的就是中央杏仁核对进食的调节作用。
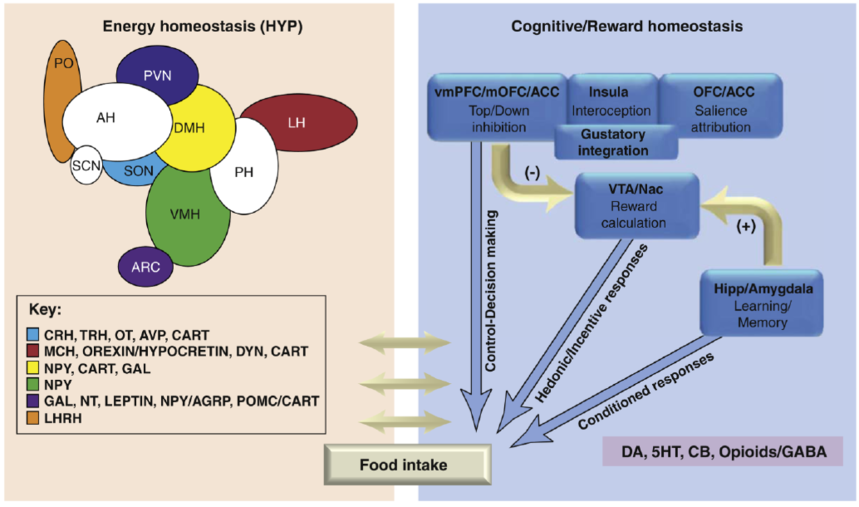
图2能量代谢稳态与认知愉悦稳态影响进食过程。引自[3]。 2017年8月21日,Nature Neuroscience杂志发表了来自马克斯-普朗克研究机构(Max Planck Institute)Rüdiger Klein实验室的研究论文《Central amygdala circuits modulate food consumption through a positive-valence mechanism》,通过使用Inscopix nVista自由活动钙成像和在体操控脑区与环路的方法,揭示了中央杏仁核(central nucleus of the amygdala, CeA)中表达5-羟色胺2a受体的抑制神经元在调节食物消耗量中的作用[4]。
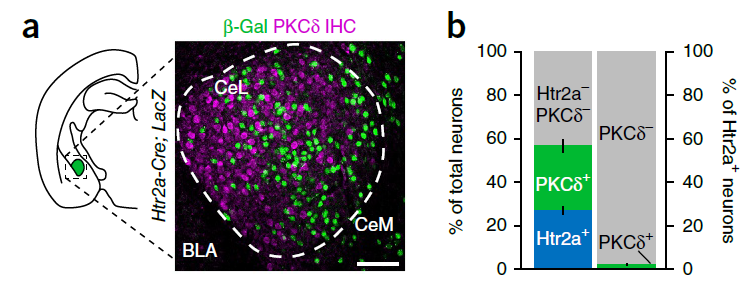
图3 Rüdiger Klein教授,马普神经生物所主任。 之前,CeA被认为参与恐惧,焦虑以及调节进食行为。在2014年Caltech的David J. Anderson实验室发现了激活PKCδ阳性的CeA抑制性神经元可以抑制进食行为。本文作者通过对大量转基因小鼠库的筛查,找到了相对特异在CeA表达的Htr2a-Cre转基因小鼠,这群小鼠在CeA特异标记表达5-羟色胺2a受体亚型的神经元。 首先,他们发现这群Htr2a+的神经元和PKCδ+神经元几乎不共标(如图4)。
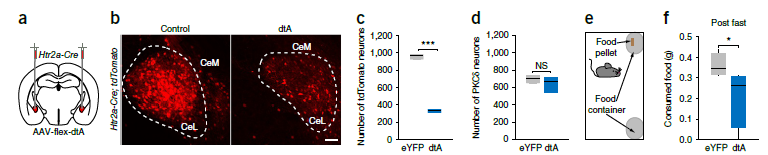
图4 Htr2a+的神经元和PKCδ+神经元代表两类独立的CeA抑制神经元。 接下来,他们使用了药理学操控(DREADDs)的方法研究激活Htr2a+的神经元是否对进食有影响。在Htr2a-Cre小鼠的CeA表达Cre依赖的激活性hM3Dq腺相关病毒(adenovirus-associated virus, AAV),在腹腔注射CNO后,在没做饥饿处理的情况下,实验组明显比对照组吃得多(图5)。当然,小鼠并不是什么因为变傻了,什么都多吃,作者用和食物外表相似,硬度也相似的泥块作为对照,小鼠还是不会多吃的。
图5 双侧激活Htr2a+神经元可以使进食增多。 进一步,作者关心的是进食的欲望更低的时候,激活这些Htr2a+神经元能否改善进食。结果在LiCl处理或者LPS处理导致进食欲望下降的模型中,实验组小鼠同样吃得更多。甚至在一些通常小鼠不爱吃的苦味食物模型中,实验组也会增加进食(当然,辨别苦味的能力并没有改变)。这些结果告诉我们,无论是正常情况还是缺乏进食欲望的情况下,激活Htr2a+神经元都可以增加小鼠的进食量。 是不是这些小鼠为了多吃会更努力的获取食物呢?通过训练小鼠通过用鼻字接触按钮(鼻触)从而获取食物,作者发现两组小鼠对获取食物付出的行为努力并没有明显差异。同样,他们也证明了焦虑水平和运动能力并没有明显差异。 通过使用另一种激活方法——光遗传技术,作者同样发现了类似的结果。20 Hz 473 nm激光直接激活这些神经元也能使进食增加。 之后,作者开始抑制这群Htr2a+神经元。首先采用药理学的方法,使用AAV表达了Cre依赖的白喉毒素(diphtheria toxin)进而杀死这些Htr2a+神经元,发现在正常喂饲料的情况下,并不影响小鼠每天的进食量与体重。但是在急性剥夺进食24小时后,小鼠应该增加进食的模型中,杀死Htr2a+神经元的小鼠进食量明显低于对照组(图6)。
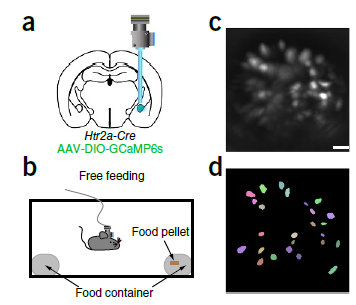
图6 使用药理学方法杀死Htr2a+神经元可以减少禁食后进食增加的现象。 同样,他们也使用了光遗传的方法抑制这群神经元,并得到了类似的结果。饥饿情况下的实验组小鼠明显进食少于对照组,结合之前激活的结果,他们证明了双向操控这群细胞是可以双向调控进食行为的,即充分又必要(对于证明某一脑区参与某一功能,双向调控有对应的结果十分重要)。 接下来,作者把焦点集中在进食过程中,CeA的Htr2a+神经元的钙信号是如何变化的。 现在研究在体细胞活性变化的方法有单通道或者多通道胞外记录,光纤钙成像记录,双光子钙成像记录和Inscopix nVista自由活动钙成像。胞外记录的优势在于可以记录单个细胞的电信号活动,是最严谨最有生理意义的信号,时间分辨率高(ms),但是技术难度大,获得数据的效率低,并且很难做到细胞特异性记录(光电极的制作和记录效率的限制)。剩下的集中记录的均为钙信号,当钙指示剂荧光上升时,我们认为反映了细胞或者脑区的活性上升。光纤成像技术可以做到细胞特异性记录,但是信号反应的是脑区细胞群体钙信号的变化,无法精确到单细胞水平。双光子成像技术可以做到细胞特异性,同时精确到细胞水平,但现阶段只能应用在皮层,主要受限于双光子的有效工作距离(数百微米)。而Inscopix nVista自由活动钙成像技术可以同时具有可应用于深部脑区,细胞特异性,单细胞水平记录这几大优势。所以,本文作者使用了Inscopix nVista自由活动钙成像技术。 使用Inscopix nVista自由活动钙成像技术,他们可以在单细胞水平观察到CeA的钙信号变化。首先,向Htr2a-Cre小鼠的CeA注射Cre依赖的GCaMP6s病毒并埋植GRIN len(GLP-0673; diameter:0.6 mm, length: ~7.3 mm),两周之后,使用配套的微型显微镜去观察在自由运动进食过程中CeA 的Htr2a+神经元的钙信号变化(图7)。
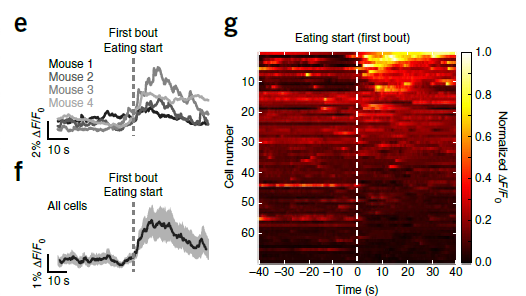
图7 使用Inscopix nVista记录在体自由运动情况下Htr2a+神经元的钙信号变化。c为采集到的GCaMP荧光信号,d为经过处理的胞体信号,进而可以做亮度比较分析。 在禁食24小时后,小鼠在第一次进食行为(first feeding bout)中,钙信号在开始时刻明显的增高,并且在之后继续升高(图8)。
图8 在第一次进食行为中,Htr2a+神经元的钙信号变化。e展示了每只小鼠所有细胞的平均反应。f展示了这4只小鼠共计69个细胞的平均反应。g为所有69个细胞的群体反应。 当把所有进食行为(all feeding bouts)对应的钙信号进行平均,他们发现了有22%的Htr2a+神经元在吃的过程中钙信号上调,有10%的神经元钙信号下调(图9)。
图9 CeA中Htr2a+神经元在全部进食行为中钙信号的变化。h图展示了两只小鼠的钙信号变化,可以看出在进食行为中,钙信号均有明显升高。i图是钙信号有明显的上调的小鼠在进食过程中的平均变化。j图是平均变化的幅度。k图展示了钙信号上调与下调对应的小鼠所占的比例。 为了进一步研究CeA中Htr2a+神经元究竟参与编码进食欲望(appetitive aspect)还是执行进食(consummatory),作者使用了鼻触获得食物的实验。通过分析鼻触行为前后钙信号变化,和获得食物进食前后的钙信号变化,他们发现只有在开始进食,钙信号才会上升,并且有些细胞的钙信号变化是几乎与进食动作同步(time-locked to eating start),有些细胞是稍有延迟钙信号再上升(delayed onset)。还有些细胞在前一半实验过程中并没有反应,而在后一半出现了有延迟的钙信号上升现象(图10)。这部分结果证明了这群细胞是参与进食动作,而不参与编码获取食物以及处理食物对应cue的过程。
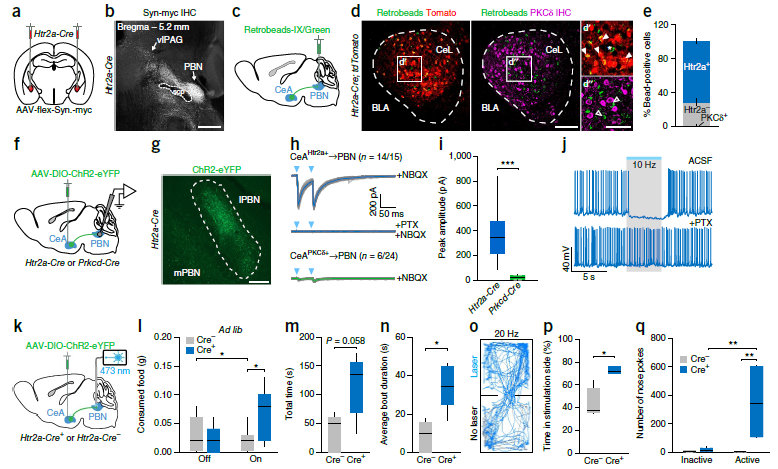
图10 在鼻触获取食物实验中CeA中Htr2a+神经元的钙活性变化。m图上方是平均钙反应,在鼻触行为以及给予食物前的声音cue前后,钙信号并没有明显变化,下方是每个trial过程的钙信号变化。n图在开始吃食物后,钙信号明显上升。o图是举例一只小鼠记录到的细胞在一次trial中的钙信号变化。p图为几个代表性细胞的钙信号变化,其中cell2是明显的与动作完全一致的类型,而cell4是钙信号明显具有延迟的后升高的类型。 这些在体钙成像的数据提供了CeA中Htr2a+神经元参与进食行为的重要在体证据。 食物本身是一种reward信号,是不是CeA中的Htr2a+神经元其实参与的是reward获得的过程。作者发现这些神经元可以诱导条件位置选择偏好,同时鼻触获得光刺激这群神经元的实验组也比对照组明显多的自发出现鼻触行为。这些结果证明了激活CeA中的Htr2a+神经元是一种正强化(positivelyreinforcing)的作用。而光遗传抑制这群神经元则会降低小鼠为获得食物的努力。 之后他们用脑片电生理的方法证明了CeA的Htr2a+神经元可以和PKCδ神经元产生抑制性突触联系。从而找到了一条可能参与进食行为的CeA内部的微环路。而通过rabies病毒的方法,也证明了这两类细胞之间存在相互投射(图11)。
图11 在急性分离脑片上,证明了CeA的Htr2a+神经元可以和PKCδ神经元产生抑制性突触联系。 而真正可能参与调控进食过程的是从CeA的Htr2a+神经元到脑干臂旁核PBN的投射。通过光遗传激活这条投射,他们发现了小鼠进食量的增加和条件位置选择偏好的现象,这提示我们之前激活Htr2a+神经元胞体的现象很可能是通过这条环路发挥作用的。当然,现在的实验证据并不能排除是刺激末梢导致动作电位回传引发胞体兴奋的可能,所以我认为还需要补充两个实验。第一个是在CeA混合注射DIO-ChR2与DIO-hM4Di病毒,在激活投射的同时抑制CeA胞体的实验作为对照。第二个是在CeA注射DIO-ChR2病毒,在PBN注射hSyn-hM4Di病毒,在激活投射的同时抑制PBN的胞体。只有得到这两个实验结果,才能确定是这条投射的功能(图12)。
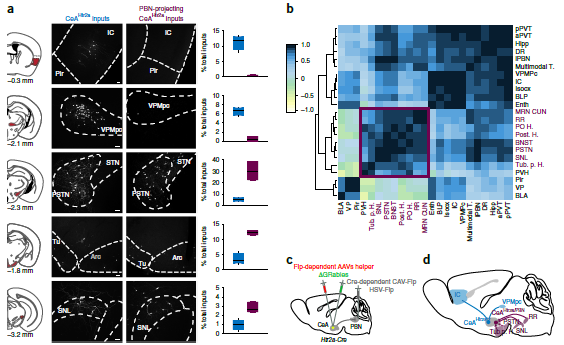
图12 CeA的Htr2a+神经元向PBN的投射可能调节进食行为。 最后,作者比较了CeA中Htr2a+神经元的输入与只投射到PBN的Htr2a+神经元的输入之间的差异,他们发现投射到PBN的神经元的上游包括弓状核,parasubthalamic nucleus (PSTN),多巴胺系统的部分脑区等。而全部Htr2a+神经元的上游还包括岛叶皮层(insular cortex),gustatory thalamus(VPMpc),背侧raphe等区域(图13)。
图13 投射到PBN的Htr2a+神经元的上游与全部Htr2a+神经元的上游比较。
总结这篇文章,我们知道中央杏仁核中表达Htr2a的神经元以及它的可能的环路是如何调节进食行为的。文章使用的药理学与光遗传学技术,rabies逆标技术都比较熟悉,文章中真正的技术亮点则是Inscopix nVista自由活动钙成像技术。 看到这里,你有没有心动? 还想用c-Fos蛋白来证明你关心的脑区活性?这已经远远不够了,必须要在体的证据。 Inscopix nVista自由活动钙成像技术的几大优势将助力您研究的科学问题,不要让CNS与您擦肩而过! 参考文献: 1. Atasoy D, Betley JN, Su HH, Sternson SM. Deconstruction of a neural circuit for hunger. Nature 2012; 488:172–177. 2. Briggs DI, Andrews ZB. Metabolic status regulates ghrelin function on energy homeostasis. Neuroendocrinology 2011; 93:48–57. 3. Volkow ND, Wang GJ, Baler RD. Reward, dopamine and the control of food intake: Implications for obesity. Trends Cogn Sci 2011; 15:37–46. 4. Douglass AM, Kucukdereli H, Ponserre M, et al. Central amygdala circuits modulate food consumption through a positive-valence mechanism. Nat Neurosci 2017.
滔博生物TOP-Bright是一家集研发,生产,销售于一体的专注于神经科学产品及致力于向高校、科研机构等领域提供实验室一体化方案的高科技企业。业务服务范围已遍布至全国各地几百家实验室。 目前公司主营产品是享誉全球的国际一线领导品牌,主要有:Inscopix自由活动超微显微成像系统,DiveScope多通道活体内窥镜系统,功能神经外科电生理平台,动物行为系统(自身给药、条件恐惧、斯金纳、睡眠剥夺、经典迷宫等),PiezoSleep无创睡眠检测系统,NeuroNexus神经电极,电生理信号采集系统,膜片钳系统,双光子显微镜等。这些仪器设备都是科学研究所必备且不可替代的基础仪器之一。 自成立以来,滔博生物TOP-Bright本着诚信、公开、诚实和公平的原则展开业务,努力营造员工和客户之间互相尊重、坦诚沟通、高效互动的健康环境。不断引进和推广国内外先进技术和设备,为提高高校、科研机构等领域的常规实验水平,不遗余力地提供先进的实验仪器及技术服务。 |