|
【Inscopix应用】Neuron:据说有个突变受体影响了睡眠觉醒行为睡眠对我们的生存至关重要,许多疾病都与长期睡眠质量差有关。在我们能够利用睡眠来增加我们的健康之前,有必要对睡眠的调节进行更深入的了解。 Shi Guangsen教授在先天睡眠更少的一群人身上发现了一个位于ADRB1上的突变。这项研究成果发表在Neuron上题为“A Rare Mutation of β1-Adrenergic Receptor Affects Sleep/Wake Behaviors”,该研究通过使用小鼠模型和Inscopix公司的nVista自由活动钙成像实验,研究人员证明了突变个体上的背侧脑桥(DP)区ADRB1+神经元的活动性升高了,并与其升高的觉醒相关。
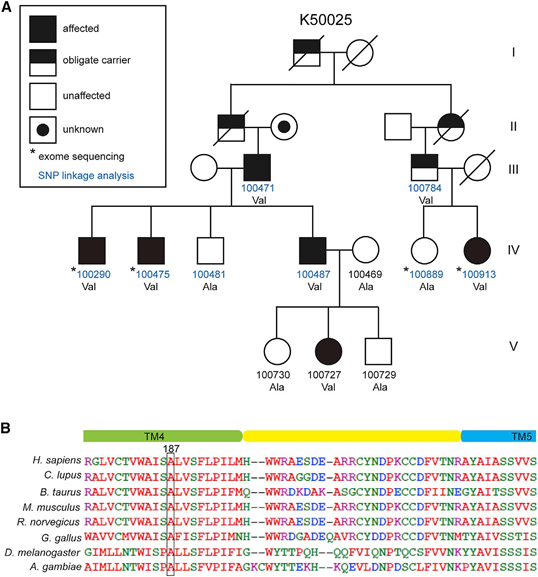
一,变异初现 我们经常说有的人天生觉少,有的人天生觉多,事实上,确实有的人,先天的睡眠时间比普通人少,精神上却没有明显不同,那是刻在基因里的故事。 通常而言,先天少觉 (Natural short sleep, NSS)是指那些一生中每晚只睡4-6小时并且感觉休息良好的人。这个团队就发现了一个具有家族性先天睡眠少的案例,接着研究人员从这个家系中分离出了一个与家族性先天短睡眠(Familial natural short sleep, FNSS)相关的常染色体显性的等位基因 (图1A)。家族样本经过全外显子组测序然后进行SNP连锁分析发现,β1肾上腺素能受体的编码基因ADRB1中有一个非常罕见的变异,位于染色体10q25.3上,涉及基因序列的C到T改变,可导致β1肾上腺素能受体中第187位丙氨酸到缬氨酸的转变。这一变异与FNSS相偶联。而这第187位丙氨酸残基在脊椎动物和无脊椎动物中高度保守(图1B)。要知道,β1肾上腺素能受体是一个g蛋白偶联受体(GPCR),它有7个跨膜结构域。A187残基位于第4跨膜区。
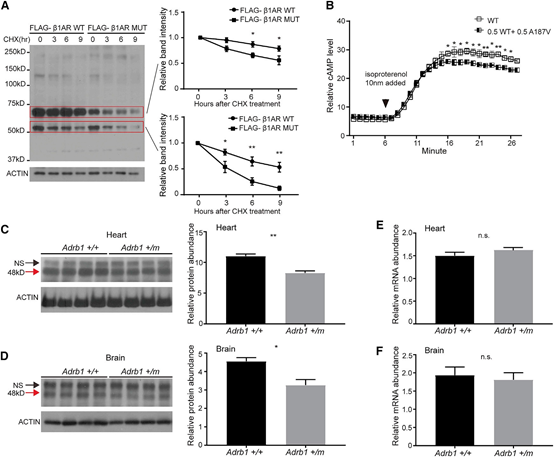
二,突变后的受体变了样 为了了解这种突变引起的变化,研究人员首先比较了突变型(mut)和野生型(wt)蛋白的结构稳定性。环己亚胺可以抑制真核细胞内的蛋白合成,如图2A所示,在培养细胞中加入环己亚胺后,突变蛋白的稳定性低于WT蛋白。 由于β1肾上腺素能受体可介导腺苷酸环化酶活化从而生成cAMP(之后cAMP介导细胞信号转导),研究人员接下来研究了突变对cAMP合成的影响。实验分两组,实验组为野生型和突变型蛋白(1:1)的混合物,对照组为单纯的野生型受体蛋白,分别转染细胞后,用非选择性激动剂异丙肾上腺素处理,实验组cAMP产量下降显著(图2B),说明突变蛋白可能改变了功能。课题组使用CRISPR/Cas9技术制造了Adrb1-A187V基因敲入小鼠。实验发现,突变 (Adrb1 +/m)小鼠的内源性β1AR水平显著下降(图2C和图2D),而mRNA水平保持不变(图2E和图2F),表明蛋白水平下降的原因发生在转录后。这与培养细胞中突变蛋白的稳定性低于野生蛋白的发现一致(图2A)。
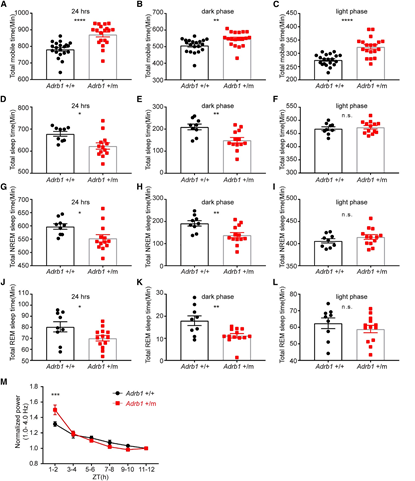
三,变异后的小鼠,觉更少了 为了确定这种变异是否对睡眠有影响,研究人员通过行为学实验和测量脑电/肌电(EEG/EMG)的方法测量小鼠的睡眠/觉醒行为。行为学实验使用ANY–maze设备(红外摄像机监控小鼠活动)。转基因突变鼠(Adrb1+/m)小鼠在24小时内的活动时间增加(图3A),且移动时间在明/暗两个阶段都有所增加(图3B和图3C)。与此同时,通过脑电图/肌电图(图3D)测量,突变小鼠24小时内的总睡眠时间比正常小鼠短55分钟,且这种下降只出现在黑暗期(图3E、3F和S1A)。与野生型小鼠相比,突变鼠在黑暗期的非快动眼睡眠(NREM)和快动眼睡眠(REM)时长均显著缩短。这些结果表明,Adrb1 A187V突变可导致睡眠减少和活动时间增加,这与在人类中观察到的情况相似。 由于睡眠压力与δ波(即深睡眠波,脑电图上1-4.0 Hz范围内的波)呈正相关,研究人员研究了δ波在明亮期的变化。突变鼠在明亮期(ZT0-12)开始阶段(ZT1-2) 的δ波明显高于WT小鼠,并在整个光期迅速下降(图3M)。表明突变鼠在清醒时积累了更多的睡眠压力。
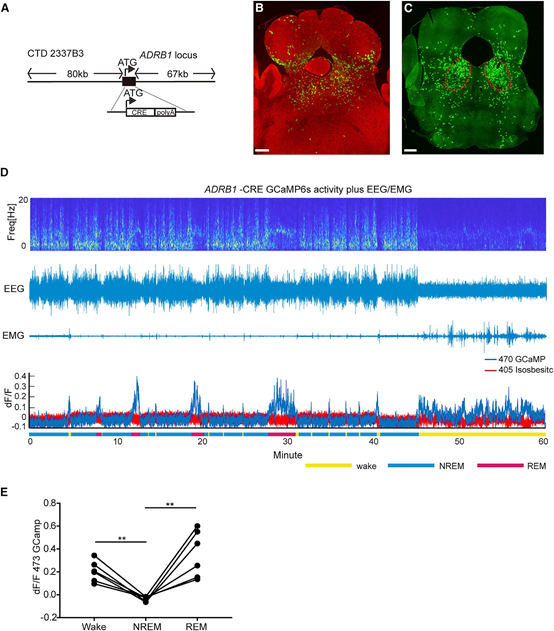
四,Adrb1和睡眠有关系吗? 为了寻找答案,研究人员构建了携带ADRB1-Cre基因的小鼠。将一个带有ADRB1启动子后接Cre重组酶基因的人工染色体导入小鼠体内 (图4A)。将Cre小鼠分别与Rosa-mT/mG和Ai32 (loxP-flankedChR2-EYFP)两种转基因鼠杂交后,通过对子代小鼠大脑进行检查,发现有几个区域Cre活性较高,包括海马、外侧隔核、内侧前额叶皮质、DP(图4B、4C)及其他几个结构。DP区域包括外侧被盖核(LDTg)、外侧被盖核腹侧(LDTgV)和部分臂旁核(PB)的主要部分,这些区域已知参与调节睡眠行为。研究人员将Cre依赖的编码EGFP的AAV(AAV2/EF1a-DIO-EGFP-L10a)注入该区域,用鼠源Adrb1和GFP探针对脑切片进行染色。约80%的GFP阳性细胞呈Adrb1阳性。DP中Cre+的细胞经富集后的qPCR显示,内源性的Adrb1基因较对照富集3- 4倍。因此,Cre活性在很大程度上代表了该区域Adrb1的表达。
因为DP包含不同的神经元群,然后,研究人员通过注射病毒AAV8-hsin-dio-mCherry(mCherry)标记DP的ADRB1+神经元。染色显示,DP中ADRB1+细胞分别为谷氨酸能(37%)和GABAergic(25%)。 为了评估DP中ADRB1+细胞在正常睡眠/觉醒状态下的活性,研究人员用光纤记录了自由活动小鼠ADRB1+神经元的钙信号。研究人员在ADRB1-Cre小鼠的DP中注入了一种依赖于Cre的AAV,该AAV编码荧光钙指示剂GCaMP6s (AAV1/Syn-Flex-GCaMP6s-WPRE-SV40)。研究人员植入了美国Inscopix公司的nVista自由活动钙成像透镜(用于随后的激发光传输和荧光发射收集)和脑电图/肌电图电极。结果显示,ADRB1+神经元在清醒和REM时期活跃,在NREM时期保持静息(图4D和4E)。这些发现表明,在不同的睡眠-觉醒状态下,DP中的ADRB1+神经元通过改变它们的活动,以参与调控睡眠和觉醒的变化。
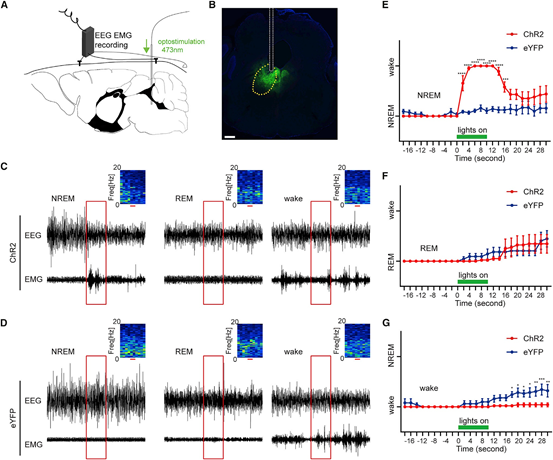
五,刺激ADRB1+神经元能不能改变睡眠/觉醒? 研究人员接下来研究人员应用光遗传的方法来激活DP中的神经元。研究人员往ADRB1-Cre小鼠的DP中分别注射两种病毒,实验组往单侧脑中注射Cre依赖的AAV来表达通道光敏感视紫质与EYFP的融合蛋白,对照组则注射表达EYFP的AAV,并同样植入inscopix显微镜头和EEG/EMG电极(图5A和图5B)。光刺激为10s/ trial,并同时进行脑电图/肌电图记录,根据后续分析,这些脑电图/肌电图结果可分为NREM、REM和清醒状态(图5C、5D和5F)。觉醒阶段的刺激对状态转换没有显著影响,尽管它可能在维持醒后状态方面发挥作用(图5C、5D和5G)。这与生理条件下这些神经元在觉醒和REM时处于活动状态的事实是一致的(图4D和4E)。在觉醒和快动眼睡眠状态下,这些神经元的额外激活不能改变这些状态,因为神经元已经处于活动状态。但实验组非快动眼睡眠到觉醒的转换表明,DP区的ADRB1+细胞主要是促进wake的。
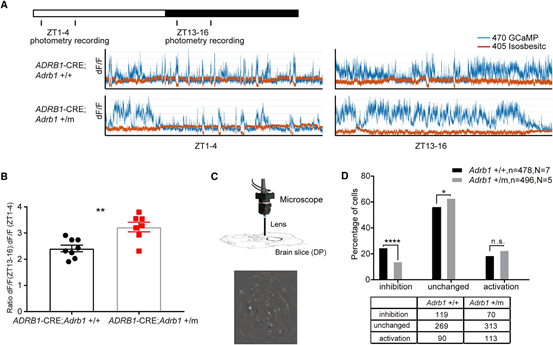
六,ADRB1的突变能不能改变神经元的活动? 现在知道了DP区ADRB1+神经元活动可以调节睡眠/觉醒转换,且ADRB1-a187v突变小鼠的睡眠/觉醒行为也发生改变,接下来的问题就是ADRB1-a187v突变是否影响DP区ADRB1+神经元的活动。研究人员将转基因ADRB1-Cre小鼠与Adrb1-A187V小鼠杂交,并将与上述相似的inscopix光遗传实验应用于ADRB1-Cre;Adrb1+/+和ADRB1-Cre;Adrb1+/m老鼠。为避免小鼠的个体差异影响,研究人员比较了同一只鼠从活跃 (ZT13-16)到睡眠阶段(ZT1-4)的相对GCaMP信号振幅。发现Adrb1+/m小鼠的相对振幅明显大于Adrb1+/+小鼠(图6A和6B)。说明ADRB1+神经元的活性受ADRB1-A187V突变的影响。 为了进一步探讨GCaMP信号的变化是否为神经元自主的效应,研究人员对ADRB1-Cre;Adrb1+/+和ADRB1-Cre;Adrb1+/m小鼠新鲜分离的DP外植体进行了单细胞钙成像实验(图6C)。经多巴酚丁胺(一种选择性β1激动剂)处理后,ADRB1+神经元对GCaMP信号的反应变化不同,如图6D所示,在ADRB1+ /m切片中,多巴酚丁胺抑制的DP ADRB1+神经元的比例显著性的更低(56.7%)。同时,多巴酚丁胺激活的DP-ADRB1+神经元的比例在两组间是类似的。说明突变对ADRB1+神经元有不同程度的影响。但整体上看,突变体中被抑制的神经元数量要比WT小得多,这与突变小鼠中ADRB1+神经元群活性总体增加的情况一致(图6A和6B)。
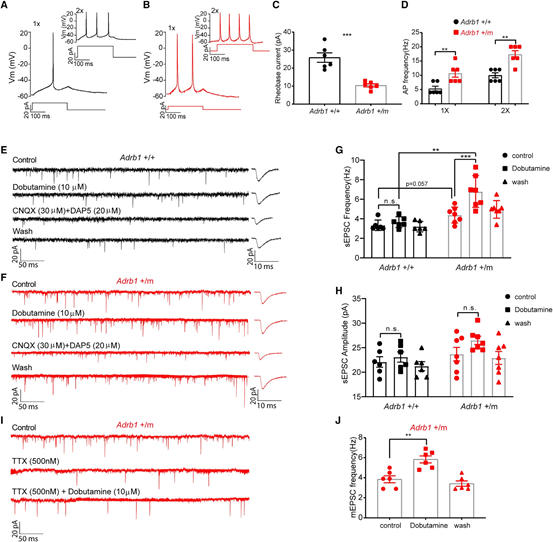
七,基因突变真的带偏了那些神经元 为了排除突变小鼠的ADRB1+神经元活动性增加可能由于兴奋性增强的原因。研究人员将编码Cre依赖的EGFP的AAV病毒注入DP区,来标记ADRB1+细胞。之后记录两种小鼠脑切片中的ADRB1+神经元所发放的动作电位(图7A和图7B),这些动作电位均可被河豚毒素(TTX)阻断。实验发现,与对照鼠相比,突变鼠的ADRB1+神经元有一个显著降低的最低刺激阈值电流 (图7C),而膜静息电位,电压阈值或过冲动作电位,两种小鼠间均无显著差异。此外,与对照鼠的神经元相比,突变鼠的神经元放电频率显著增加(图7D)。这些电生理特性表明突变型小鼠的神经元更容易兴奋 研究人员还记录了对照或突变小鼠样品在神经元拮抗剂的处理下,切片中的自发兴奋性突触后电流(sEPSCs)。因为DP区的细胞是异质性的,所以还继续分析了多种细胞的电生理特性。两种小鼠均有部分被谷氨酰胺能拮抗剂CNQX和DAP5阻断掉sEPSCs的神经元(40%的对照组神经元; 32%的突变组神经元)(图7E和7F)。未经处理的突变组的基底sEPSC频率略高于对照组(图7G),经过多巴酚丁胺处理后,增加了突变型神经元的sEPSC频率,但不增加对照组的频率(图7G)。此外,两种基因型在多巴酚丁处理器前后,sEPSC振幅均未见明显变化(图7H)。研究人员进一步分析了突变型切片在TTX处理后的mEPSCs (图7I),发现,在TTX处理下,mEPSC频率仍然增加,表明突触前终端自发释放谷氨酸的增加与动作电位的产生无关(图7J)。
通过对这种发现在先天就比普通人睡眠少的人群身上的突变基因进行研究,我们已经知道了这种突变对个体的一些影响。在体外,这种突变会导致蛋白质稳定性下降,并抑制部分信号传导。在体内,携带相同基因突变的小鼠则同样表现较短的睡眠行为。这种受体在脑桥背侧的神经元中高度表达,并且这些ADRB1+神经元在快动眼睡眠(REM)和清醒时更加活跃。激活这些神经元可以导致清醒,而这一受体基因的突变导致这些神经元的活动性受到影响。这些结果证明了ADRB1在睡眠/觉醒调节中的重要作用。
滔博生物TOP-Bright是一家集研发,生产,销售于一体的专注于神经科学产品及致力于向高校、科研机构等领域提供实验室一体化方案的高科技企业。业务服务范围已遍布至全国各地几百家实验室。 目前公司主营产品是享誉全球的国际一线领导品牌,主要有:Inscopix自由活动超微显微成像系统,DiveScope多通道活体内窥镜系统,功能神经外科电生理平台,动物行为系统(自身给药、条件恐惧、斯金纳、睡眠剥夺、经典迷宫等),PiezoSleep无创睡眠检测系统,NeuroNexus神经电极,电生理信号采集系统,膜片钳系统,双光子显微镜等。这些仪器设备都是科学研究所必备且不可替代的基础仪器之一。 自成立以来,滔博生物TOP-Bright本着诚信、公开、诚实和公平的原则展开业务,努力营造员工和客户之间互相尊重、坦诚沟通、高效互动的健康环境。不断引进和推广国内外先进技术和设备,为提高高校、科研机构等领域的常规实验水平,不遗余力地提供先进的实验仪器及技术服务。 |